2026 年诺贝尔生理学或医学奖解析——
光遗传学:从衣藻的一束光到神经科学的因果时代
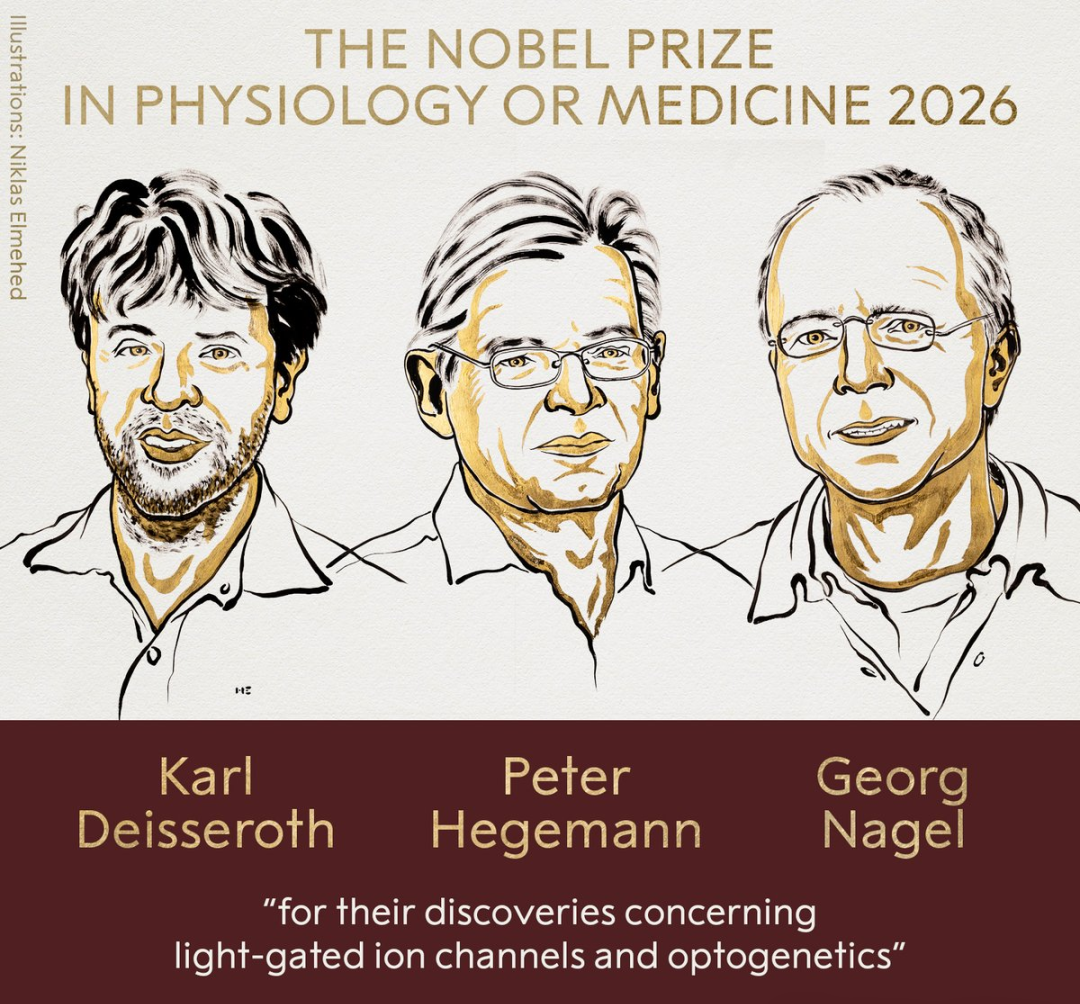
获奖者:Karl Deisseroth(斯坦福大学 / 霍华德·休斯医学研究所,1971– )、Peter Hegemann(柏林洪堡大学,1954– )、Georg Nagel(维尔茨堡大学,1953– )
获奖理由:发现光门控离子通道(light-gated ion channels)与光遗传学(optogenetics)
意义:过去我们只能「看」大脑在想什么时亮起来;现在我们能亲手「按开关」,第一次真正证明「到底是哪根电线导致了这个行为或疾病」
获奖时间:2026 年 10 月 5 日,卡罗琳医学院诺贝尔大会
奖金:1200 万瑞典克朗(约 801 万元人民币),三人均分
一. 奖项坐标:诺奖为什么在 2026 年才来

假设你在监控画面里看到:每次某间屋子亮灯时,路口的红绿灯就会变。你能由此断定是这盏灯控制了红绿灯吗?不能——它们可能只是碰巧同时发生,也可能有第三个原因。几十年来,神经科学就卡在这个问题上。
过去研究大脑主要靠两种办法:一是"录像"——用电极记录神经元放电,看动物做某件事时哪些细胞活跃;二是"粗暴干扰"——用药物或电击让一大片脑区异常。第一种只能证明"相关",第二种又太粗糙:电一刺激,几百万个神经元一起被激活,根本说不清楚到底是哪一个起了作用。
光遗传学的做法极其巧妙:先通过基因手段,只让某一类特定的神经元长出一扇"光敏小门";然后把一根比头发还细的光纤插进大脑,照一束蓝光。结果是是——只有装了这扇门的细胞会放电,旁边的细胞完全不受影响,时间精度可以精确到千分之一秒。
这样一来,相关就变成了"因果":如果我照蓝光,小鼠立刻开始绕圈;我关灯,它立刻停下。那么我可以确定地说,就是这一小群神经元导致了这个行为。这在以前是做不到的。
光遗传学不是新故事。2010 年它就入选 Nature Methods 年度方法,2013 年入选 Science “十年突破”,业内早已把它视为"诺奖级技术",过去十余年几乎每年都在预测名单前列。
2026 年才颁奖的原因值得玩味:诺奖委员会需要的不只是"技术很有名",而是"技术的影响已充分兑现"。过去五年里,光遗传学完成了从"神经科学实验室工具"到"临床治疗手段"的关键跨越——视网膜退行性疾病患者的视觉功能恢复论文陆续见刊,环路层面的因果结论在帕金森、抑郁、成瘾、癫痫领域系统性积累。委员会确认了这条链路的完整性,才最终落下这锤。
诺奖委员会主席 Per Svenningsson 的官方表述是:"光遗传学从根本上改变了我们对大脑的理解,它以我们过去只能在梦中想象的方式,为绘制大脑图谱提供了机会。"
二. 三个人的接力:一个分子、一次验证、一场工程化
2.1 前史:微生物视蛋白的六十年伏笔
光遗传学不是凭空出现的,整个领域建立在微生物视蛋白(Microbial rhodopsin)六十年的研究之上:
· 1971 年,Oesterhelt 与 Stoeckenius 发现细菌视紫红质(Bacteriorhodopsin)——一个光驱动的 H⁺ 泵;
· 1977 年,嗜盐菌视紫红质(Halorhodopsin,Cl⁻ 泵)被发现;
· 随后是各种感觉视蛋白(Sensory rhodopsin)。
这类蛋白的共同点:视黄醛(retinal)发色团通过质子化席夫碱共价连接在赖氨酸残基上,吸光后发生全反式到13-顺式的异构化,导致席夫碱的去质子化,从而驱动蛋白构象变化。动物视觉用的是 G 蛋白偶联的视紫红质,信号级联需要数百毫秒;微生物视蛋白是"一步到位"的光电器件,这个背景决定了后来的一切。
2.2 Hegemann:0.5 毫秒的推理
20 世纪 90 年代初,Hegemann 在研究莱茵衣藻(Chlamydomonas reinhardtii)的趋光行为时注意到一个数字:光照后约 0.5 毫秒,藻细胞即产生完整的再生性电信号(regenerative response)。这个速度是决定性的,任何"光受体→G 蛋白→第二信使→离子通道"的级联都无法在 0.5 ms 内完成。唯一的解释是:存在一种蛋白,自己既是光感受器,又是离子通道——光信号到电信号的转换在同一个分子上完成。
这个推理后来被证明完全正确。Hegemann 团队据此锁定衣藻眼点中与光感受相关的基因,为下一步的功能验证铺路。
2.3 Nagel:爪蟾卵母细胞上的"分子法庭"
Nagel 的贡献是完成了不可辩驳的功能性验证,他将候选基因分别注入非洲爪蟾卵母细胞(异源表达的经典体系),用双电极电压钳记录光诱导电流:
· 2002 年:鉴定出 ChR1,证明其可直接响应光照产生 H⁺ 电流;
· 2003 年,鉴定出 ChR2(Channelrhodopsin-2)——蓝光照射后 0.2 ms 内通道开放,非选择性阳离子(Na⁺、H⁺、Ca²⁺、K⁺)顺电化学梯度涌入,细胞去极化。
他们还做了一个影响深远的补充实验:把 ChR2 转入人胚肾细胞(HEK293),HEK293细胞同样变成光敏细胞。这个"无关细胞也能感光"的观察,等于向全世界宣告:这个蛋白不挑细胞,可以装进任何细胞膜。 2003 年其论文结语明确提出:ChR2 可以作为"用光在任意细胞中触发电脉冲的通用工具"。
2.4 Deisseroth:从"能用"到"人人能用"
工具存在,与工具可以被任何实验室复现,中间隔着巨大的工程鸿沟。Deisseroth 团队补齐了全部环节:
· 2005 年,Nature Neuroscience:将 ChR2 基因经病毒载体导入大鼠海马神经元。蓝光一照,神经元以毫秒精度产生动作电位,且光控发放与生理性钠通道发放难以区分。
· 2007 年:将光控开关植入活体小鼠运动皮层,通过颅骨上的光纤传输蓝光,成功驱动胡须运动——首次在自由活动的动物中实现"光→行为"的因果闭环。
· 同年配套建立立体定位注射—光纤植入—行为学的标准化操作流程,并公开分发质粒。全球实验室"开箱即用",光遗传学从此爆发式扩散。
· 2006 年,Deisseroth 正式命名该技术为 Optogenetics(光遗传学)。
为什么说三人的贡献缺一不可:没有 Hegemann 的物理直觉,就没有候选分子;没有 Nagel 的异源验证,ChR2 只是一个藻类基因而非"工具";没有 Deisseroth 的工程化与标准化,它就只是 Deisseroth 实验室的独门手艺。诺奖选择了这条完整链条上的三个关键节点。
三. 分子机制解析:ChR2 是怎样一个"光控阀门"
3.1 光循环(photocycle)
ChR2 的工作循环可以概括为:
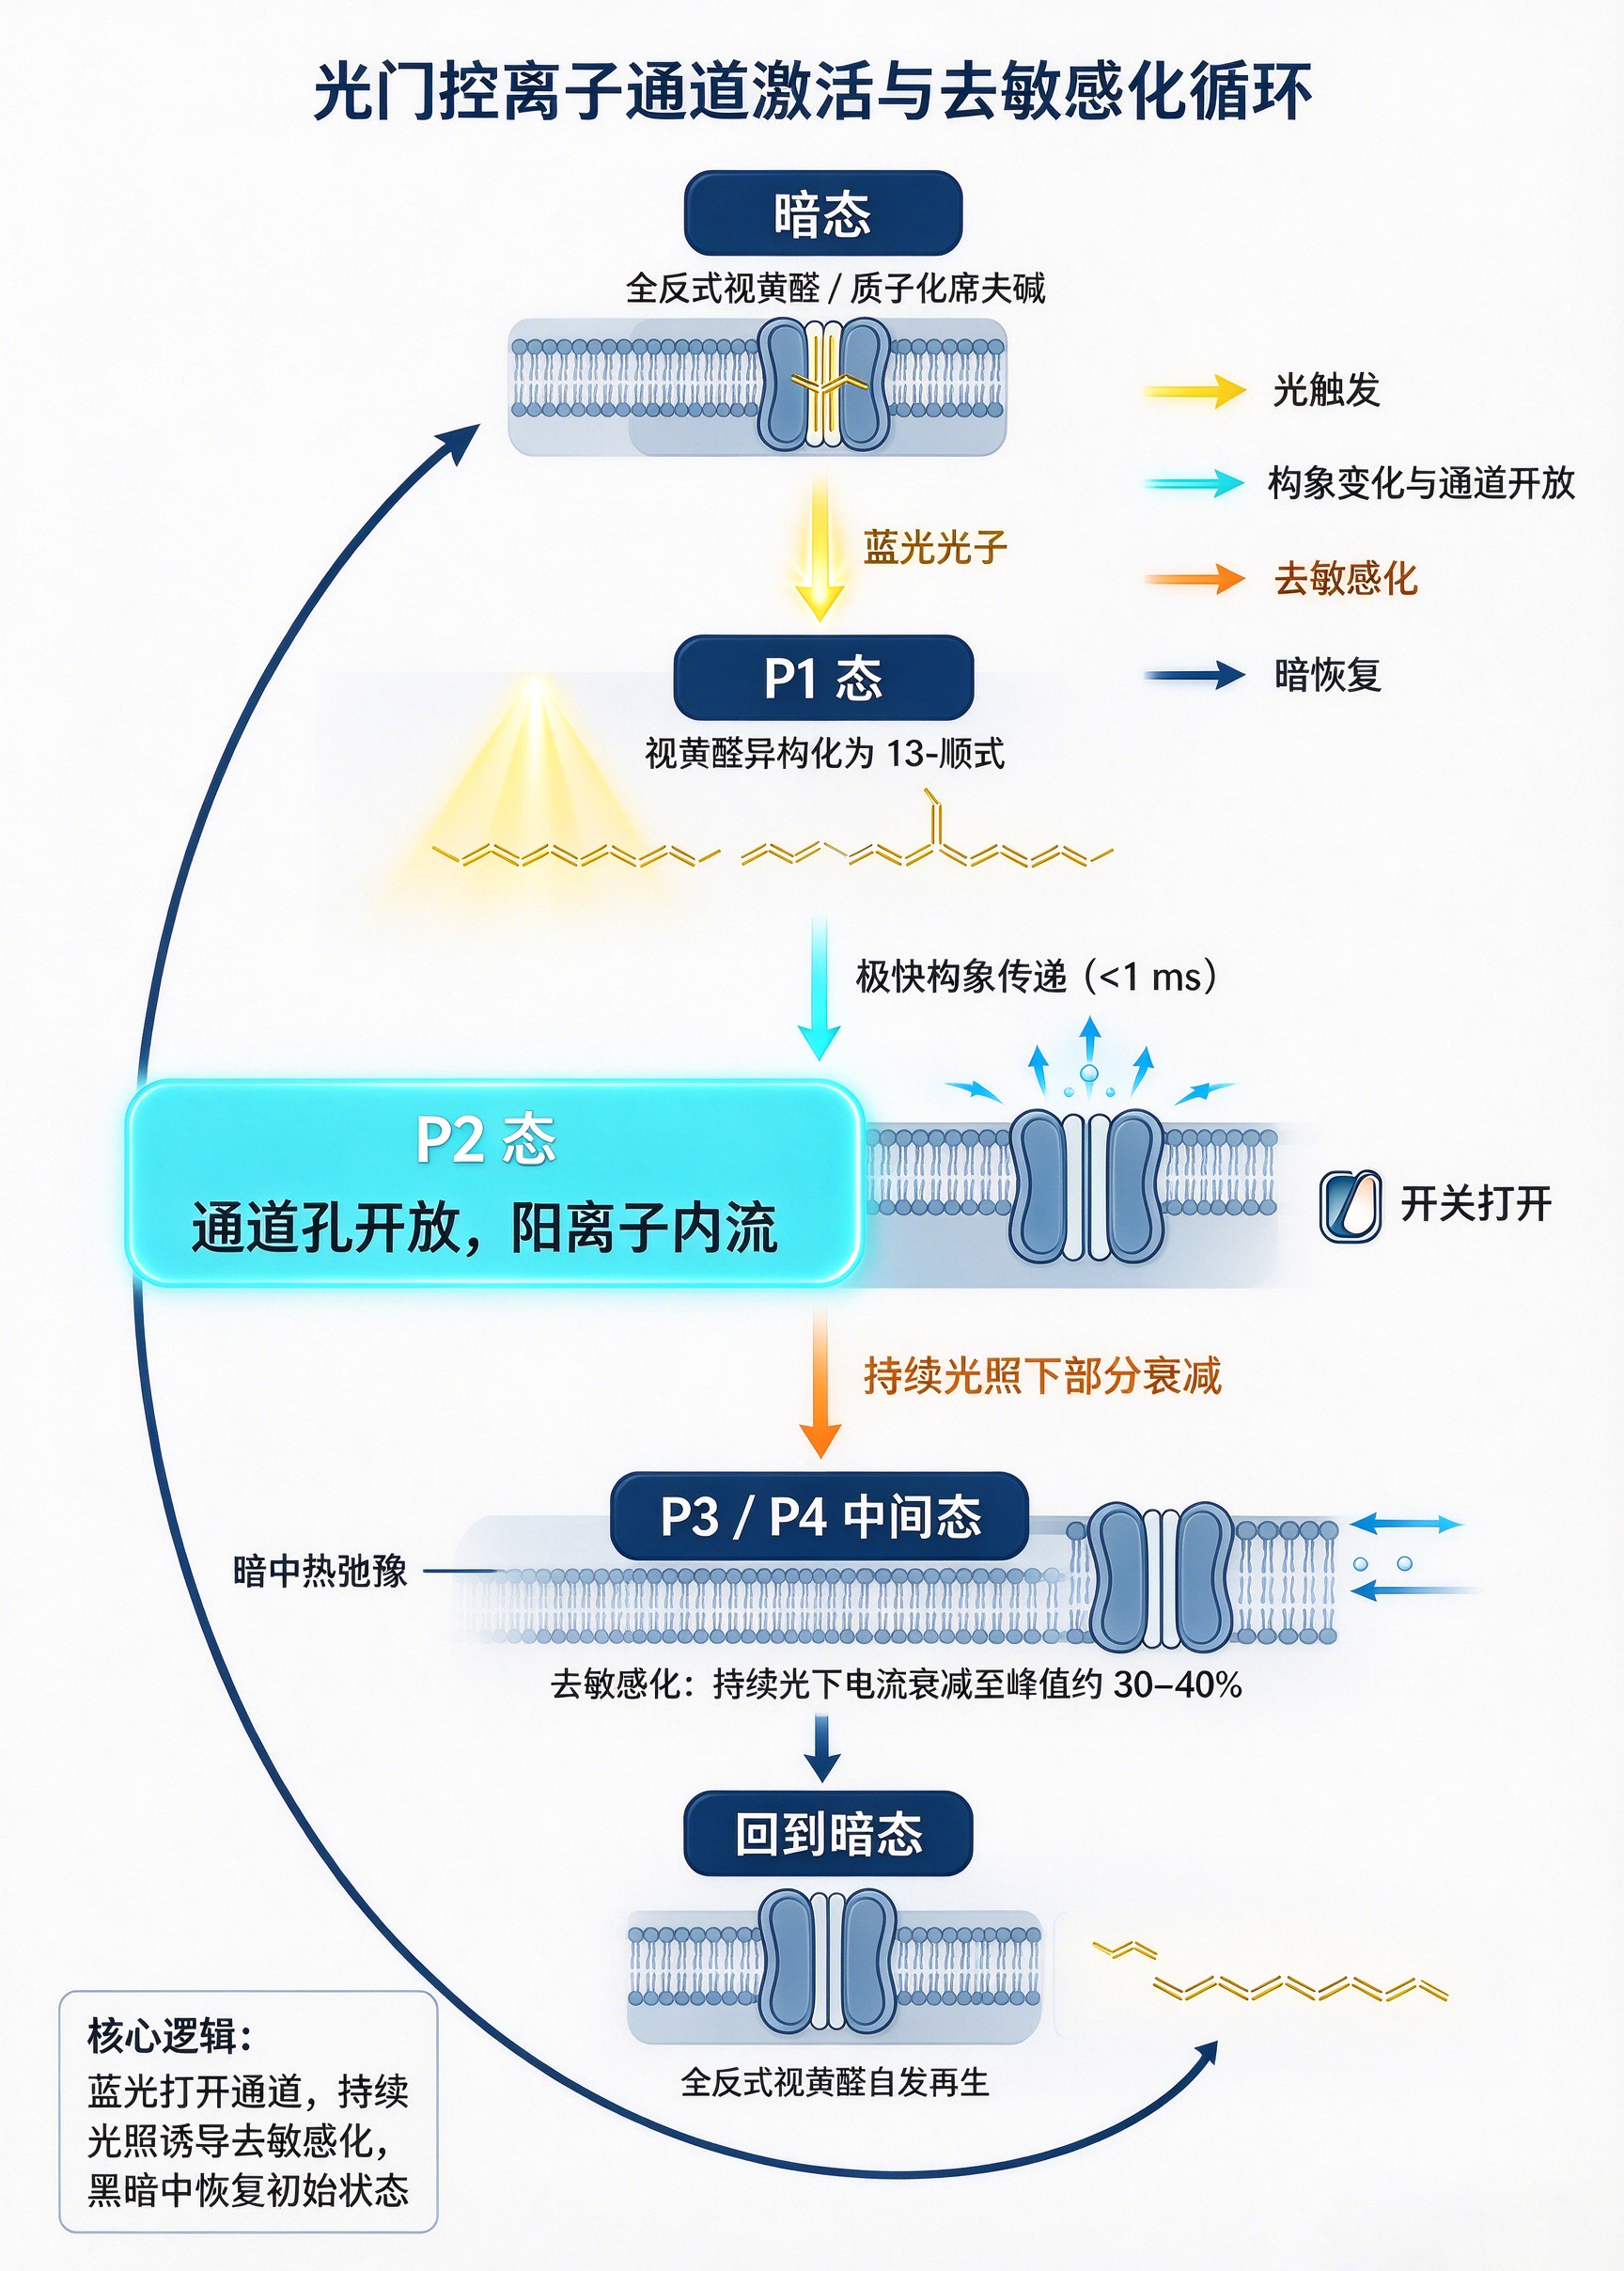
关键点有三个:
(1)视黄醛辅因子是自给自足的。动物视网膜视杆细胞需要 11-顺式视黄醛并依赖 RPE 的视觉循环再生;而 ChR2 用的是全反式视黄醛(R801647),暗态下自发与席夫碱重新平衡,哺乳动物脑内源的全反式视黄醛即可支撑其运转——这是 ChR2 能直接用于活体大脑而无需外加辅因子的化学基础。外源补充全反式视黄醛可提升光电流幅度。
(2)单通道电导极小,约几十飞法西门子(fS)量级。这意味着必须有高密度膜表达才能产生可观的宏观电流——这是后来各种工程改造(H134R、ChETA、ChRmine)的核心目标——提高表达效率、膜转运、单位电流。
(3)去敏感化与关闭动力学是天然短板:持续光照下电流衰减,关闭时间常数(off-τ)约 10 ms 级,限制高频发放保真度(>40 Hz 后单光子响应开始合并)。
3.2 结构生物学:从"能用的阀门"到"可设计的阀门"
· 2012 年,Kato 等解析了 ChR1/ChR2 嵌合体 C1C2 的晶体结构(Nature),首次给出通道孔、栅极和视黄醛结合口袋的原子级图像;
· 随后数年,光循环各中间态的结构陆续被捕获,闸门开启的构象机制被阐明;
· 近年 ChRmine 的冷冻电镜结构被解析,指导了红移、大电流工具的理性设计——这个方向现在仍在快速迭代。
结构信息把 Opsin 工程从"随机突变筛选"推进到"基于结构的理性设计",这也是这个领域能持续产出新一代工具的根本原因。
四. Opsin 工具箱:二十年迭代出的一整个谱系
2005 年之后,光遗传学工具经历了三代以上的系统升级。这是理解"这项技术为什么改变了神经科学"的必要知识。
4.1 激活性 Opsin(光→兴奋)
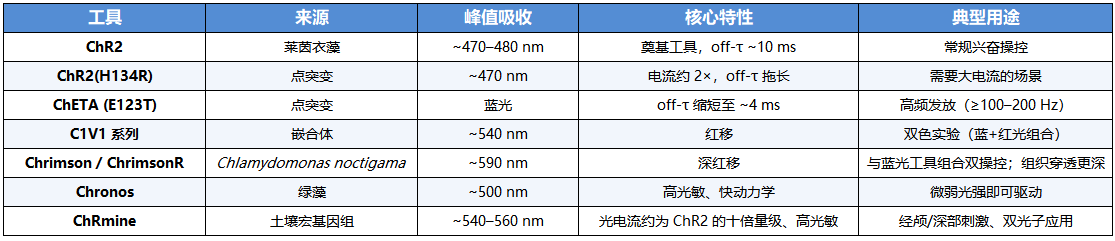
ChRmine 值得单独说明:其超大光电流与高光敏感度使得经颅(transcranial)红光刺激小鼠大脑成为可能——不用开颅、不用植入光纤,即可无创操控特定神经元。
4.2 抑制性 Opsin(光→沉默)
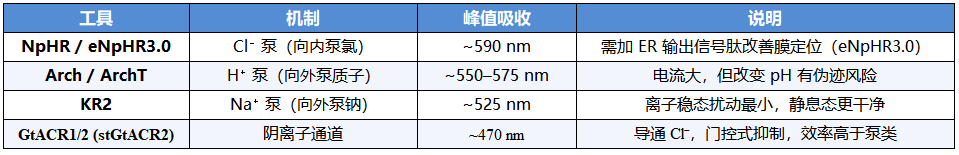
泵类(NpHR/Arch/KR2)是持续搬运单个离子、速度受限;通道类(ACR)是门控式的批量离子流,抑制效率更高但可能改变胞内氯稳态,影响 GABA 传递的判断。
4.3 双向控制与组合策略
· 双色光遗传学:ChR2(蓝)+ Chrimson(红)组合,同一动物中独立操控两群神经元;
· 兴奋+抑制:ChR2 + eNpHR3.0,同一群神经元的"开"与"关";
· 细胞靶向递送:AAV 血清型组织趋向性(AAV2/9 广谱神经元、rAAV2-retro 逆行标记)+ 启动子细胞特异性(hSyn 泛神经元、CaMKIIα 兴奋性神经元、GFAP 星形胶质细胞)+ Cre-lox DIO/FLEX 系统(在特定 Cre 驱动鼠中实现单细胞类型表达);
· 活动依赖靶向:c-Fos-CreER(TRAP)技术,把 opsin 装进"当时恰好激活的那批神经元"——记忆印记(engram)研究的核心技术;
· 全光学方案:opsin 激活 + 荧光/电压成像同时进行,摆脱电极,实现"光控 + 光读"闭环。
五. 可参考的实验工作流
一个完整的在体光遗传学实验过程如下(以"操控特定脑区兴奋性神经元→行为学→组织学验证"为例):
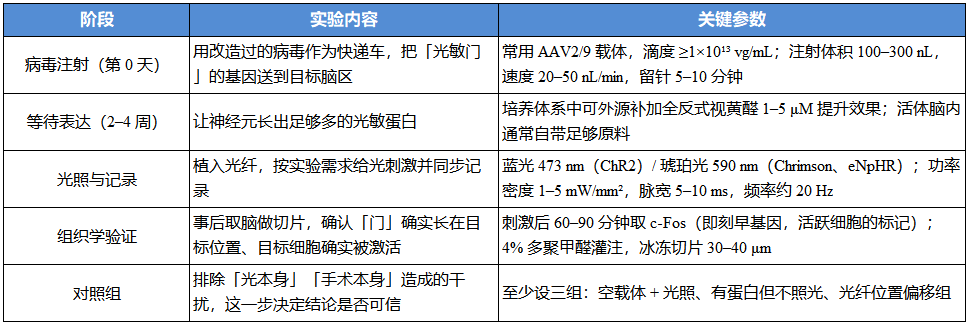
六. 冷思考:诺奖的取舍与未列名者
为什么 2005 年那篇奠基论文的第一作者没获奖?
Edward Boyden 是光遗传学领域最常被提到的"第四个名字"。但委员会最终把奖项限定在"光门控离子通道的发现(Hegemann/Nagel)+与哺乳动物神经元的工程化(Deisseroth)"这一发现链上。Boyden 的贡献更多在于体系应用与推广,而非分子发现本身。这个取舍再次印证诺奖的遴选逻辑:奖给发现,而非发明后的传播。
为什么"第一个想到的人"没获奖?
Gero Miesenböck在2002 年即用笼锁 ATP + P2X2 实现了光控果蝇神经元,是"用光控制神经元"的概念先行者。但笼锁化合物方案未被其他实验室广泛采用。相比之下,Hegemann/Nagel 的 ChR2 是"装进任何细胞都工作"的普适工具。诺奖再次选择了可复制、可标准化的工具,而非第一个想法。
补充——Deisseroth 的溢出贡献
Deisseroth同时是 CLARITY 组织透明化技术(2013,Nature)的开创者——光遗传学负责看功能, CLARITY负责看结构,同一个实验室对人类认识大脑做出双贡献,这在诺奖史上相当罕见。
七. 麦克林相关推荐产品清单
| 货号 | 产品 | CAS | 纯度 | 用途与用法 |
| R801647 | 全反式视黄醛 | 116-31-4 | ≥98% | ChR 家族 opsin 的必需发色团。培养体系补加 1–5 μM 可提升光电流幅度;体内脑源供给通常足够,但离体脑片/培养神经元建议补充。
配制:DMSO 或无水乙醇配 10–50 mM 母液,琥珀瓶 −20 °C 避光,避免反复冻融;操作全程弱光 |
| A800895 | 氯化乙酰胆碱,99% | 60-31-1 | 99% | 胆碱能通路验证;脑片/培养神经元外源灌流使用 |
| A800896 | 氯化乙酰胆碱,for cell culture | 60-31-1 | 99% | 细胞培养级,低内毒素,神经分化研究优选 |
| A794133 | 氯化乙酰胆碱,10 mM in DMSO | 60-31-1 | 即用型 | 免称量直接稀释,避免 DMSO 母液反复冻融 |
| G6204 | L-谷氨酸,99% 生物技术级 | 56-86-0 | 99% | 主要兴奋性递质;光激活谷氨酸能神经元后的外源对照;NMDA/AMPA 电流记录配液 |
| L675488 | L-谷氨酸,≥99% | 56-86-0 | 无动物源, 低内毒素 | 电生理与细胞培养的高纯优选 |
| L861680 | L-谷氨酸单钠盐一水合物 | 1536304 | 分析标准品 | 微透析/脑组织氨基酸含量的 HPLC 外标 |
| L675574 | 甘氨酸,≥99% | 56-40-6 | 无动物源, 低内毒素 | NMDA 受体共激动剂,aCSF 加 1–10 μM 记录 NMDA 电流必备 |
| L768562 | L-谷氨酰胺,≥99% | 56-85-9 | 无动物源, 低内毒素 | 神经元培养必需氨基酸;非动物源降低外源因子风险 |
| N873840 | NBQX | 118876-58-7 | 98% | AMPA/红藻氨酸受体竞争性拮抗剂(IC₅₀:AMPA 0.15 μM,KA 4.8 μM) |
| N794361 | NBQX,10 mM in DMSO | 118876-58-7 | 即用型 | 省去称量 |
| R864577 | D-AP5((R)-(-)-2-氨基-5-膦酰戊酸) | 79055-68-8 | 99% | 选择性 NMDA 受体竞争性拮抗剂(Kd 1.4 μM) |
| P920995 | 法洛芬 | 114012-12-3 | ≥97% (NMR) | GABA_B 受体拮抗剂,与 NBQX/AP5 组合用于全突触电流分离 |
| N807334 | 甲基硫酸新斯的明 | 51-60-5 | 98% | AChE 抑制剂;胆碱能脑片实验 aCSF 加 1–10 μM 防内源 ACh 降解 |
| P890356 | 多聚甲醛-戊二醛固定液 |
| 4% / 2.5% | 光遗传术后经心灌注首选;GA 组分增强超微结构保存,兼容电镜 |
| P885738 | 多聚甲醛-戊二醛固定液 |
| 2% / 2.5% | 浸没固定或较温和灌注 |
| 768600 | 多聚甲醛固定液 |
| 16% in H₂O | 浓缩母液,用 PBS 稀释至 4% 工作液,性价比高 |
| P885233 | 多聚甲醛固定液 |
| 4% in H₂O | 即用型 |
| D718485 | DAPI 染色液 |
| 1mg/mL | 脑片核复染标配;稀释至 0.5–1 μg/mL,室温 5–10 min;
Ex 358 nm / Em 461 nm,与 FITC/TRITC 通道无串扰 |
| D669617 | DAPI 染色液 |
| 10μg/mL | 即用浓度,直接对培养细胞染色 |
| H6110 | Hoechst 33342 | 23491-52-3 | 生物技术级 | 活细胞核染料(透膜性好);光刺激后存活评估,1 μg/mL 10–20 min |
| B802976 | Hoechst 33258 | 23491-45-4 | 98% | 固定细胞核染色,与 Alexa 488/594 共标兼容 |
| T931111 | 台盼蓝染色液 |
| 0.40% | AAV 感染或药物处理后的活细胞计数 |
| F715264 | c-Fos Rabbit pAb |
| 适用于WB,IHC-P,ICC/IF,ELISA | 标记光遗传刺激后被激活的神经元,用于在组织切片上定位、定量光刺激诱发产生兴奋的细胞群体,验证光调控的激活效果。 |
麦克林是实验用生物试剂大规模生产商,我们针对生产和生化技术客户提供定制配方制剂
【生物产品专题页】
访问麦克林官网:www.macklin.cn 了解更多产品
参考文献:
1. Nagel G, Szellas T, Huhn W, et al. Channelrhodopsin-2, a directly light-gated cation-selective membrane channel. PNAS. 2003;100(24):13940–13945.
2. Boyden ES, Zhang F, Bamberg E, Nagel G, Deisseroth K. Millisecond-timescale, genetically targeted optical control of neural activity. Nat Neurosci. 2005;8(9):1263–1268.
3. Aravanis AM, Wang LP, Zhang F, et al. An optical neural interface: in vivo control of rodent motor cortex with integrated fiberoptic and optogenetic technology. J Neural Eng. 2007;4(3):S143.
4. Kato HE, Zhang F, Yizhar O, et al. Crystal structure of the channelrhodopsin light-gated cation channel. Nature. 2012;482(7385):369–374.
5. Liu X, Ramirez S, Pang PT, et al. Optogenetic stimulation of a hippocampal engram activates fear memory recall. Nature. 2012;484(7394):381–385.
6. Gradinaru V, Mogri M, Thompson KR, et al. Optical deconstruction of parkinsonian neural circuitry. Science. 2009;324(5925):354–359.
7. Sahel JA, Boulanger-Tabet S, et al. Partial recovery of visual function in a blind patient with optogenetic therapy. Nat Med. 2021.
8. Fenno L, Yizhar O, Deisseroth K. The development and application of optogenetics. Annu Rev Neurosci. 2011;34:389–412.
9. Nobel Prize in Physiology or Medicine 2026 – Press Release & Scientific Background. nobelprize.org.
10. 新华社. 三名科学家获 2026 年诺贝尔生理学或医学奖. 2026-10-05.